V průběhu evoluce mnohobuněčných organismů se brzy ukázalo, že aktivní pohyb, ať už obranný - v podobě jednoduchého zmenšení povrchu těla při podráždění - nebo naopak z nutnosti přemístit se za potravou, představuje obrovskou výhodu. Tak vznikly specializované dráždivé buňky, které umožnily reagovat na rozličné podněty svou kontrakcí. Později se tyto dráždivé elementy rozčlenily do dvou linií - neuronů a myocytů. Každé svalové vlákno obsahuje stovky až tisíce dlouhých vláken, které se nazývají myofibrily. Myofibrila samotná se skládá z dlouhých polymerů aktinu, troponinu a tropomyosinu (tzv. lehká filamenta) a asi polovičního počtu těžkých filament, která se sestávají z myosinu. Funkční jednotkou každé myofibrily je pak sarkomera. Jedná se o úsek, který leží mezi dvěma po sobě jdoucími Z disky.
Vnitřní prostorové uspořádání myofibril je zcela zásadní pro efektivní průběh kontrakce. Těžká filamenta jsou složena z molekul myosinu. Jedna molekula myosinu obsahuje šest polypeptidových řetězců: dva těžké řetězce a čtyři lehké řetězce. Těžké řetězce myosinu se kolem sebe zprvu vzájemně otáčejí a tvoří dlouhou alfa-helikální strukturu zvanou ocas molekuly myosinu. Posléze se vzájemně rozbíhají a tvoří tak krátký úsek (tzv. paže) na jejichž konci se nachází globulární doména těžkého řetězce. Globulární doména asociuje se dvěma molekulami lehkých řetězců a tvoří, tak hlavu molekuly myosinu. Je dobré předem zmínit, že myosinové hlavy vykazují ATPázovou aktivitu. Základem aktinové molekuly jsou dvě molekuly dlouhého vláknitého proteinu F-aktinu. Každé z těchto vláken je složeno z polymerizovaných molekul G-aktinu. Opět dochází k vzájemnému obtáčení řetězců (F-aktinu) a vzniku helikální struktury. Aktinové vlákno je navíc i nositelem tzv. aktivních míst, což jsou v podstatě pouze vazebná místa pro myosinové hlavy, rozmístěná v pravidelných rozestupech po celé délce F-aktinu. Jeden konec vlákna aktinu je velmi silně přichycena do Z disku sarkomery.
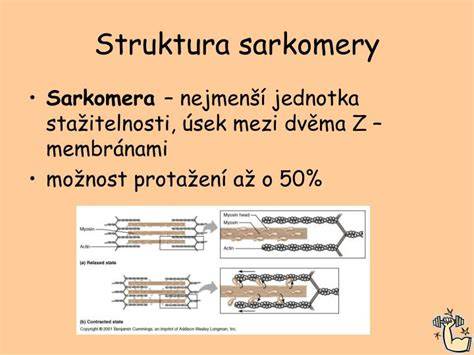
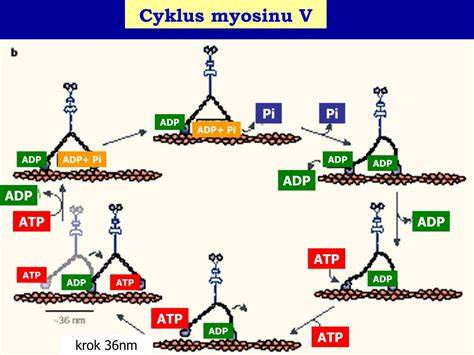
Kolem helixu f-aktinu se obtáčí další vláknitý protein - tropomyosin. Svým průběhem zakrývá aktivní místa na aktinovém řetězci. Poslední složkou lehkých filament je protein troponin, který je přichycen k tropomyosinu. Troponin I je doménou, která se váže na aktin, čímž napomáhá tropomyosinu zakrývat aktivní místa. Troponin C vykazuje vysokou afinitu k ionizovaným vápenatým iontům (odtud její název “C” - z anglického calcium). Při adekvátním podnětu na tzv. nervosvalové ploténce dojde k uvolnění zásob vápenatých iontů z intracelulárního zásobníku (sarkoplazmatického retikula) do sarkoplazmy. Toto kalcium se s vysokou afinitou váže na troponin C. Tak dojde ke změně konformace a obnažení aktivních míst na f-aktinovém helixu. Vzhledem k vysoké afinitě myosinových hlav k aktivním místům aktinu dojde ke vzniku tzv. můstků. Za můstek považujeme dočasnou ale silnou vazbu vazbu mezi myosinem a aktinem. “Walk-along” spočívá v následujícím mechanismu. Ihned po vzniku vazby myosinová hlava - aktinové aktivní místo dojde ke konformační změně ve volné části molekuly myosinu. Ta způsobí změnu úhlu hlavy vůči helikální části myosinu a tedy vzájemný posun lehkých a těžkých filament. Říkáme, že filamenta po sobě vzájemně kloužou. Spolu s ohybem volné části myosinu dojde k uvolnění ADP, které bylo na hlavě myosinu navázáno a jeho místo zaujme ATP. Vazba ATP je signálem pro zánik můstku a návratu volné části myosinu do předchozího konformačního uspořádání. V této “klidové poloze” štěpí myosin ATP na ADP a fosfát. Tento cyklus se opakuje stále znovu, dokud není dosaženo maximální možné kontrakce nebo není odpor proti svalové síle natolik velký, že další kontrahování nemůže proběhnout. Množství spotřebovaného ATP je samozřejme úměrné svalové práci. To s jakou počáteční silou bude kontrakce na molekulární úrovni probíhat závisí na délce protažení sarkomeru.
Při dalším prodlužování (d > 2 μm) dojde k rozšíření proužků I a H a zkrácení proužku A. Při dalším zkracování (d < 2 μm) dojde k zkracování proužku I. Jinými slovy, pokud dojde k jakémukoliv odchýlení od ideální délky sarkomery, je vždy část myosinových hlav nevyužita. Svalová vlákna jsou inervována cholinergními alfamotoneurony z předních rohů míšních. Na sarkolemu svalového vlákna jsou axony těchto neuronů zapojeny speciálním aparátem zvaným neuromuskulární junkce, neboli nervosvalová ploténka. Z morfologického hlediska se jedná o povrchovou invaginaci bouttons terminoux axonu do sarkolemy svalového vlákna, která je shora překryta Schwanovými buňkami. Membrána nervového terminálu je od sarkolemy oddělena synaptickou štěrbinou širokou asi 20 nm - membrány tedy nepřicházejí do přímého kontaktu.
Tato štěrbina není zcela prázdná, ale nachází se v ní řídce propletená síť nejrůznějších proteinů, mnohé s enzymatickou aktivitou. Zvláštností jsou další četné drobné invaginace na povrchu sarkolemy v oblasti svalové ploténky, které se nazývají subneurální štěrbiny. Jejich úkolem je pravděpodobně zvětšovat plochu sarkolemy zavzaté do neuromuskulární junkce. Ta je totiž bohatá na tzv. nikotinové receptory, které zprostředkují převod vzruchu z nervu na sval. Axonový terminál je pak zvláště bohatý na mitochondrie, které produkují ATP na syntézu acetylcholinu v cytoplazmě terminálu. Aktivní zóna je modifikovanou částí membrány, která sousedí se synaptickou štěrbinou. Obsahuje molekulárně biologický aparát pro vylití synaptických vezikul a už v inaktivním stavu váže několik vezikul připravených exocytóze. Synaptická vezikula ve svém nitru nesou kvantum neurotransmiteru. Kvantum je minimální množství, které může presynaptický terminál uvolnit. Počet uvolněných kvant závisí na frekvenci a počtu akčních potenciálů, které dorazí k zakončení axonu. Jakmile akční potenciál depolarizuje membránu otevřou se kalciové kanály a vápenaté kationty začnou po svém koncentračním gradientu difundovat do cytoplazmy terminálu. Acetylcholin difunduje synaptickou štěrbinou a váže se na sarkolemě na nikotinové receptory. Ty lze klasifikovat jako ionotropní receptory řízené ligandem. Jedná se v podstatě o kationtové kanály propustné pro Na+ a Ca2+ (v omezené míře též pro K+).
Jejich základní dělení rozlišuje muskulární typ - NM receptor, který je přítomen právě na nervosvalové ploténce, a neuronální typ - NN receptor. Svalové vlákno má mnohem větší průměr než vlákno nervové, ve skutečnosti příliš velký na to, aby se akční potenciál rozšířil i na membránové organely v blízkosti myofibril, zejména pak na membránu sarkoplazmatického retikula. Proto vznikl systém T - tubulů, které jsou dlouhé invaginace sarkolemy, spojují se a větví. Probíhají v blízkosti každé myofibrily a úzce souvisejí se sarkoplazmatickým retikulem. Dihydropyrimidový receptor na T-tubulích reaguje na změny membránového potenciálu a je spřažen s ryanidovým receptorovým kanálem na sarkoplazmatickém retikulu. Kalcium je z retikula do sarkoplazmy uvolňován a kontrakce pokračuje tak dlouho, dokud zůstává kalcium v dostatečné koncentraci.
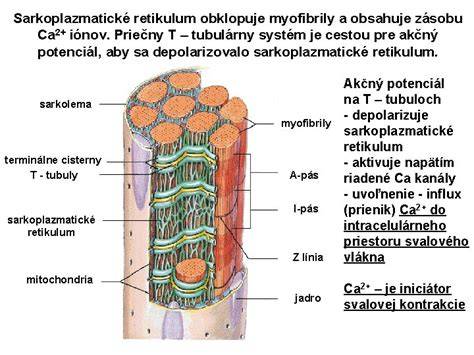
Na membránách sarkoplazmatického retikula se nachází kalciová pumpa, která za spotřeby ATP kontinuálně pumpuje kalcium zpět. Jelikož je tato pumpa aktivní kontinuálně, kontrakce pokračuje, dokud je aktivní ryanidový receptorový kanál. Izometrický stah je takový stah, během kterého sval nemění svou délku, ale pouze napětí. Izotonický stah je takový stah, během kterého sval nemění své napětí, ale pouze délku. Tento rozdíl je klíčový pro pochopení různých pohybových situací a schopnosti svalů vykonávat práci. Kontrakce hladkého svalu se liší od kontrakce svalu příčně pruhovaného několika charakteristikami. Buňky hladkého svalu neobsahují troponin a jejich ATPázová aktivita je řízena kalcium-kalmodulinovým komplexem. Hladký sval postrádá zřetelný sarkomer a má denzní tělíska kotvící lehká filamenta k membráně, která mohou být spojena i s sousedními buňkami. Nervová inervace hladkého svalu pochází z autonomního nervového systému a neurotransmitery zahrnují noradrenalin a acetylcholin, s různým účinkem na konkrétní buňky podle receptorů.
Buňky hladkého svalu reagují na hormony z krve, jako jsou adrenalin, noradrenalin, angiotenzin, endotelin, ADH, oxytocin, serotonin a histamin. Mechanismus účinku se liší podle receptorů excitačních a inhibičních - excitační receptory vedou k depolarizaci a otevření kalciových kanálů, inhibiční receptory často zvyšují permeabilitu pro kalcium nebo zavírají kanály, čímž se snižuje pravděpodobnost vzniku akčního potenciálu. Některé buňky hladkého svalu, například u arteriol a prekapilárních sfinkterů, mohou bez vlákna autoního nervového systému reagovat na lokální podmínky (hypoxie, hyperkapnie, změny pH, hyperkalcemie) a vyvolat vazodilataci či kontrakci.
Svalová vlákna tvoří komplexní, mnohonukleární buňky. Sarkomery jsou vlastní kontraktilní jednotkou svalových vláken a jejich délka a uspořádání určují sílu a rozsah pohybu. Svaly se váží na kostru prostřednictvím šlach z fibrovitého vaziva, které umožňují efektivní přenos síly na kost. Při kontrakci dochází k překrývání aktinových a myosinových vláken, což generuje pohyb a práci. Kontrakce kosterního svalu může být koncentrická (krácení svalu), excentrická (prodloužení svalu) nebo izometrická (stav bez změny délky svalu, jen napětí).
Klíčové pojmy a mechanismy
- Sarkomera - základní funkční jednotka sarkomerního systému, mezi dvěma Z disky.
- Myosin - těžká filamenta; hlavy vykazují ATPázovou aktivitu; vazba na aktin vytváří můstky a posun filament.
- Actin - lehká filamenta; aktivní místa pro myosinové hlavy; tropomyosin a troponin regulují expozici aktivních míst.
- Nervosvalová ploténka - neuromuskulární synapse, kde acetylcholin spouští depolarizaci svalové vlákna.
- T-tubuly a sarkoplazmatické retikulum - zprostředkovávají rychlou depolarizaci a uvolnění kalcia pro kontrakci.
- Kalcium a kontrakce - uvolněný Ca2+ se váže na troponin C, vznikají můstky, cyklus WALK-ALONG; ATP je spotřebován při hydrolýze na ADP a fosfát.
- Hladký sval - kontrakce řízena kalcium-kalmodulinovým komplexem; absence troponinu; denzní tělíska kotvící lehká filamenta; autonomní inervace a hormony ovlivňují napětí a průchod kalcia.
Fyzikálně-mechanické souvislosti: svalová síla a délka sarkomery určují, zda dojde k posunu a zda bude kontrakce efektivní. Doba kontrakce a rychlost závisí na rychlosti cyklu hydrolýzy ATP a na dostupnosti kalcia. EMG (elektromyografie) měří elektrickou aktivitu svalů a odhaluje změny v kontrakci kvůli tréninku, hypertrofii a dalším mechanickým vlivům. Rozdíly mezi statickými a dynamickými podněty, stejně jako mezi izometrickými, izotonickými a koncentickými kontrakcemi, utvářejí na svaly komplexní funkční roli v pohybu a stabilizaci těla.
Praktické souvislosti a aplikace
- Podstatou svalové práce je kontrakce, která umožňuje pohyb a cirkulaci krve či tráveniny.
- Vyšší tuhost a aktivita svalu jsou spojeny s vyšší excitací a elektrickou aktivitou měřenou EMG.
- Faktory prostředí a mechanické charakteristiky (statické vs. dynamické podněty) ovlivňují svalový výkon a adaptaci svalů na zátěž.
- Hladký sval reaguje na lokální podmínky a hormony; specifické receptory určují typ odpovědi (kontrakce či relaxace).