Oplozené vajíčko se mění v zygotu, v níž probíhají opakovaná mitotická dělení (rýhování). Zygota se nejprve rozdělí na dvě blastomery, ty dále na čtyři atd. Jakmile se dosáhne devítibuněčného stádia, blastomery se k sobě přimykají a vytváří kompaktní buněčnou kouli (tzv. kompaktace, je podmíněna adhezivními molekulami (E-kadheriny - glykoproteiny, kompaktace je zahájena v 16 buněčném embryu).
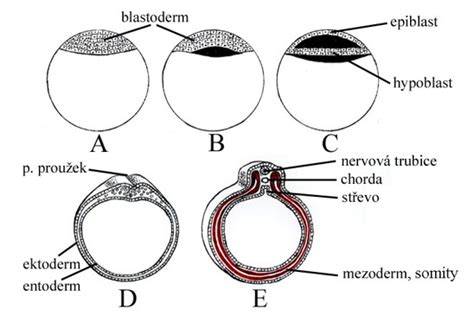
Kolem 4. dne vstupuje morula do dělohy a začíná se v ní objevovat dutina vyplněná tekutinou - dutina blastocysty. Je to proto, že morula, resp. blastocysta opouští zona pellucida procesem zvaným hatching a tekutina dovnitř dutiny v ní vniká z děložní dutiny. Skupina centrálně uložených blastomer, vnitřní buněčná masa neboli inner cell mass (ICM) (embryoblast). Blastocysta dva dny volně pluje v děložním sekretu a rychle zvětšuje objem. Obvykle se blastocysta 6. den po oplození uchytí na epitelu endometria, nejčastěji svým embryonálním pólem. 7. den vzniká delaminací epiblastu (vznikající diferenciací embryoblastu) - hypoblast.
Základní pojmy a fáze vývoje
Embryo neboli zárodek je časné stadium vývoje mnohobuněčného organismu; u člověka se jedná přibližně o první dva měsíce v děloze. Každé embryo začíná svůj vývoj jako zygota - jediná buňka vzniklá splynutím pohlavních buněk. V prvních fázích embryonálního vývoje prochází jednobuněčná zygota mnoha rychlými buněčnými děleními, které jsou odborně označovány jako rýhování; tím vzniká tzv. blastocysta, která se navenek jeví jako „obyčejný“ shluk buněk. Buňky embrya ve stadiu blastocysty se poté začnou přeskupovat do vrstev, a to v procesu zvaném gastrulace.
Po 3. vznik dvouvrstevného blastodermu - EPIBLAST a HYPOBLAST (jednovrstevný blastoderm - vytvoří druhou vrstvu - epiblast = původní blastoderm, hypoblast = nová vrstva). Hypoblast tvoří primitivní entoderm a dutina mezi epiblastem a hypoblastem umožňuje migraciformaci primitivního proužku - tudy pak buňky migrují mezi epi- a hypoblastem, budou vytvářet pravý entoderm a pravý mezoderm. Dále probíhá elongace primárního proužku směrem k anterioru, vznik Hensenova uzlu na anteriorní straně embrya a jeho pohyb k posterioru - „organizátor“ je pohyblivý.
Migrují buňky epiblastu přes Hensenův uzel a jejich diferenciace na entodermální a mezodermální buňky. Uzavření žloutkové koule a vývoj epiolií ektodermálních buněk nastává z migrujících buněk na anteriorní straně embrya; posléze vzniká přední část střeva, hlavový mezoderm a chordabuňky migrujující více posteriorně dávají vzniknout většině entodermálních tkání. Splanchnopleura a somatopleura vytvářejí obaly vnitřních a vnějších stěn těla a jejich mezi je coelom.
Embryo se rozdělí v průběhu vývoje na 2 plnohodnotné entity. Rozdělení před diferenciací trofoektodermu (před 5. dnem) - embrya, mají oddělené amniony i choriony (2 oddělené blastocysty). Rozdělení po diferenciaci trofoektodermu (mezi 5.-9. dnem) - embrya mají oddělené amniony, ale společný chorion (=> společná placenta). Rozdělení po 9. d = embrya obsahující 2 a více populací geneticky odlišných buněk.
Gametogeneze a oplození
Vajíčka (gamety) vznikají oogenezi. Oplození je vnitřně a vnější. Oplození vede k tvorbě zygoty, která prochází rýhováním. Rýhování je holoblastické pro obojživelníky, i když typ vajíčka může být izolecitální a žloutek nerovnoměrně rozložen. Morula se mění na blastocystu, díky kompaktaci a pohybu buněk.
Ochrana vajíčka a další vývojový vývoj závisí na množství a rozložení žloutku. U obojživelníků je epiblast, hypoblast a entoderm determinována v první fázi gastrulace. Primitivní proužek vyznačuje předozadní osu zárodku a migrační procesy určují další osud tkání a orgánů.
Embryogeneze u obojživelníků: rozdíly a zajímavosti
Většinu obojživelníků lze studovat na modelech Xenopus laevis a Xenopus tropicalis - drápatky jsou oblíbené pro studium řízení buněčného cyklu a vývojově biologických procesů. Oplozené vajíčko a brzké rýhování umožňují pozorovat vývoj od prvního dělení až po metamorfózu (pulce). Vajíčko je oligo- izolecitální a holoblastické; rýhování probíhá totálně a je řízeno genomem zygoty.
V dalším průběhu gastrulace se z epiblastu vyvíjí ektoderm a z hypoblastu entoderm; ektoderm a entoderm dohromady vytvářejí zárodečné vrstvy, zatímco mezoderm vzniká migrací z epiblastu přes primitivní proužek a Hensenův uzel. Vzniká primitivní neurální trubice, neurula a později nervová soustava; epiblast dává základ pro tvorbu laterálních a centrálních tkání.
V průběhu vývoje dochází k diferenciaci a tvorbě tělních dutin prostřednictvím coelomů; u savců a obratlovců se objevují unikátní orgány a systémy, jako je dýchací soustava a trávicí trakt. Metamorfóza obojživelníků je řízena hormony; některé druhy mají nepřímý vývoj s larvami, jiné probíhají s redukcí larválních stádií. Většina obojživelníků vyvíjí plně vyvinuté larvy a dospělé jedince po metamorfóze.
Příklady a souvislosti
Drápatky vodní a tropické se v minulosti hojně používaly pro těhotenské testy díky choriogonadotropnímu hormonu (hCG) v moči, který u citlivých žab vyvolává kladení vajíček. Tato schopnost umožnila studium řízení buněčného cyklu a genové regulace během embryogeneze. Mlok skvrnitý, axolotl a další ocasatí obojživelníci se používají jako modely pro regeneraci (epimorfóza). U mloka je možné dediferenciovat buňky a rediferencovat je do nových buněčných typů, což u savčích organismů nebývá běžné.
Oligolecitické a holoblastické vajíčko lidí a dalších savců vykazuje totipotenci během raného vývoje; za normálních okolností se embryo dále diferencuje a postupně tvoří plod. Oplození bývá externí u obojživelníků některých druhů a vnitřní u některých lépe diferencovaných druhů; metamorfóza a embryonální vývoj jsou monitorovatelné z důvodu přítomnosti žloutku a dutin v blastule.
Embryologie: od oplodnění k gastrulaci, animace
tags: #ryhovani #embrya #obojzivelniku